Bevezetés
A természet legcsodálatosabb találmánya az élet kódját megadó DNS struktúra, és az élőanyagot alkotó fehérjéket szintetizáló RNS (illetve mRNS) megalkotása. Korábban megfogalmaztam azt a tételt, hogy az entrópia optimális növekedéséhez a zárt rendszer egészében szükség van, hogy lokálisan magasabban rendezett struktúrák, azaz kisebb entrópiájú rendszerek alakuljanak ki. Az optimális folyamat mindig konkrét szabályok során valósul meg, ennek feltárása a biokémia és biofizika legfontosabb feladata. Ebben a folyamatban minőségi ugrást jelent, ha a már hosszú evolúciós út szerkezeti eredményeit reprodukálni lehet egy adott szinten, de megengedve a további építkezés lehetőségét is. Az élet megjelenése olyan molekuláris struktúrához kötött, amely biztosítja egyrészt az egyed, másrészt a faj fennmaradását. Ez a környezethez és annak változásaihoz való adaptációs mechanizmus, amihez egyfelöl szükség van információs mechanizmusra, amely tárolja, hogy a környezetből származó anyagokból mire van szüksége a szervezetnek, és hogyan lehet ezeket létrehozni, másrészt végrehajtja a szükséges anyagok beépítését a szervezetbe. A kétféle funkció – azaz az információ tárolása, illetve a szintézis megvalósítása – eltérő módon valósítható meg, ez tükröződik a DNS és az RNS molekulák hasonló, de mégis fontos szempontból különböző szerkezetében. Írásom egyik célja, hogy vázlatosan bemutassam az információtároló molekula lépcsőzetes kialakulásának lehetséges folyamatát, a másik cél annak keresése, hogy a kétféle funkciót (információtárolás, illetve fehérje molekula szintézis) hogyan valósítja meg a DNS és RNS molekula összetétele és geometriája. Felvetődik az a kérdés is, mennyire szükségszerű, hogy éppen a DNS és RNS molekulák játszák el ezeket a szerepeket, vajon csak véletlen volna, hogy ezek a molekulák kerültek kiválasztásra, vagy lett volna más lehetőség is? Elmondhatjuk-e, hogy tényleg az optimális folyamat valósult meg a természet törvényei által kínált lehetőségek közül?
Meddig lehet eljutni véletlenszerű kémiai reakciók által?
Mennyiben hasonlítanak, és mennyiben térnek el azok a követelmények, amelyek kétféle funkció ellátásához szükségesek? Az egyed és a faj önfenntartása rendkívül összetett folyamat, emiatt nagyméretű, makromolekulákra van szükség, de annak esélye, hogy véletlen ütközések során egy ilyen rendezett óriás struktúra létrejöjjön, rendkívül kicsiny. A véletlen által kínált lehetőségeket nagy száma miatt, olyan folyamat jöhet számításba, amely egymásra épülő fokozatokra épül, ahol a magasabb fokozatnak már az előző szint objektumai lesznek játékszerei. A kérdés, hogy mekkora méretig juthatunk el még az információtároló molekula létrejötte előtt? A véletlen által generált alapmolekulák nem lehetnek túl nagyok, reálisan egy tucatnyi atomból felépülő molekulákra lehet számítani, melyekben kulcsszerepet játszanak a hidrogén (H), a szén (C), az oxigén (O) és a nitrogén (N). Ezek kémiai tulajdonságairól korábbi írásomban volt szó.
Az élet kialakulásához nagyszámú feltételnek kellett teljesülni, ez magyarázza, hogy az élet legősibb formája csak a Föld kialakulása után félmilliárd évvel alakult ki. A feltételek legfontosabbika, hogy legyen egy műhely, ahol már ott vannak kellő koncentrációban a szükséges szerves anyagok, amit Gánti Tibor az őslevesnek nevezett el. Hasonlíthat ennek szerepe a sejtmag riboszómájában levő anyagokhoz, ahol lejátszódik a fehérjék szintézise enzimek segítségével a DNS és az RNS irányításával. Szerencsés esetben, barlangokban, mélyedésekben kialakulhatnak olyan körülmények, ahol szerves anyagok viszonylag nagy koncentrációban lehetnek jelen. Ha kedvezőek a hőmérsékleti viszonyok is elindulhatnak szerveskémia reakciók, amelyek spontán létrehozhatnak kisebb vegyületeket. Jelen lehet az fehérjék 20 aminosav komponense, jelen lehetnek alkoholok, cukrok, nitrogénalapú heterociklikus vegyületek, foszforsavak is, vagyis mindazok a vegyületek, amelyek ott vannak a sejtmag riboszómájában is. Félmilliárd év, az első eukarióta megjelenése előtt elég hosszú idő ahhoz, ilyen helyi körülmények előálljanak.
Ez is egy véletlen által diktált fizikai-kémiai folyamat? Vajon csak a Föld egyetlen szerencsés helyén alakultak ki a „paradicsomi” körülmények, vagy több helyen is párhuzamosan? Erre nem tudunk válaszolni, de az tény, hogy a rendkívül változatos élő világban mindenütt ugyanolyan DNS és RNS molekulák építik fel az élő szervezeteket. Ha több párhuzamos ősleves létezett, akkor ez azt jelenti, hogy csak egyetlen járható utat talált a természet az élő anyag felépítéséhez.
Innen induljunk tovább, hogy eljussunk az élet örökítő anyagához, a DNS-hez, és társához az RNS-hez, amely a DNS-től nyert információ alapján szintetizálni tudja az élet fehérjéinek sokaságát.
A természet felfedezett egy visszacsatolásos módszert, amikor a kisebb egyedi molekulákból fel tud építeni nagyobb egységeket, ráadásul úgy, hogy párhuzamos folyamatok oda-vissza szabályozzák egymást. Két párhuzamos polimerizáció alakult ki, az egyik a DNS molekulát építi fel, a másik összekapcsolva az aminosavakat egyre összetettebb és több funkciójú fehérjéket alkotott meg.
A DNS és RNS hélixek
Watson és Crick korszakalkotó felfedezése óta nagy utat tett meg a genetika. Alapvető, hogy két óriásmolekula játszik szerepet, az információtároló DNS és a fehérjeszintézist végrehajtó RNS. A DNS molekula, azzal a hihetetlen tulajdonsággal rendelkezik, hogy már évmilliárdok óta sikeresen teljesíti feladatát! Felmerül a kérdés, hogy milyen feltételeknek kell eleget tenni a molekulának, hogy ekkora biztonsággal megőrizze az információt? Az egyik feltétel, hogy a szerkezetét átalakító kémiai reakcióktól védve legyen, a másik a merev szerkezet, mert egy flexibilis struktúrában kevésbé egyértelmű a kiolvasható információ. Ezt a két szempontot alapul véve vizsgáljuk meg a DNS ismert szerkezetét.

- Ábra. A DNS kétszálú (középen balra) és az RNS egyszálú (középen jobbra) hélix szerkezete. Baloldalon a DNS négy hídalkotó bázisa, jobb oldalon az RNS négy bázisa
A két molekula közötti különbség tükrözi a funkciók eltérését. A DNS biztonságos információmegőrzését segíti elő, a két csavart szál közötti híd, amely megakadályozza a bázis csoportok kémiai reakcióit, szemben az RNS nyitott bázisaival, amelyek könnyen reakcióba lépve képesek elvégezni a fehérjeszintézist.
Funkcionális kapcsolat a DNS és RNS között
Itt utalunk rá, hogy van egy közbenső lépés a DNS és a fehérje közötti kapcsolatban, amit a az RNS lánc tölt be. Az RNS lánc a DNS-ből kiolvasott információt veszi át, és rendelkezik felismerő képességgel, ami azt jelenti, hogy a fehérjeszintézishez szükséges aminosavat felismeri (lásd később). Az aminosavak közül 20 bizonyult alkalmasnak, hogy peptid kötések által felépüljenek az óriási fehérje molekulák, az élő szervezetek alkotó anyagaként. A húszféle aminosavból százezres nagyságrendű fehérje struktúra építhető fel, mindegyik más és más egyedi tulajdonsággal, funkcióval rendelkezhet. Melyik válik alkalmassá, hogy előlépjen egy önfenntartó szerkezetté? Ennek megtalálásával „kísérletezett” a Föld és beletelt félmilliárd évbe, amíg az első élő eukarióta szervezethez eljutott. Bizonyos életet megelőző, de részlegesen önfenntartó struktúrák fokozatosan alakultak ki, de ehhez már szükség van az információs mechanizmus megtalálására.
Mi a molekuláris memória elvi vázlata: ez egy visszacsatolásos folyamat. De milyen összetételűnek és szerkezetűnek kell lenni az információtároló molekulának? Alapkövetelmény a nagy méret, hiszen rendkívül összetett fehérje struktúrát kell leírni. Ilyen lehet egy polimer lánc, amelynek többféle monomerje hordozza az információt a hozzá kötött bázismolekulák sorrendje által. Kell benne egy információt rögzítő molekula és egy láncösszekötő váz is. A lánc úgy jön létre, ha van egy alapmolekula, amelynek három pontja is alkalmas kötésképzésre: egy az információs bázishoz, kettő pedig a lánc elemeit összekötő molekulához. Erre a bázikus COH csoportok a legalkalmasabbak, mert létrehozhatnak észter kötéseket (bázis + sav = észter), de kapcsolódhatnak amino csoporthoz is glikozidos kötéssel. Ilyen típusú vegyületek a cukrok.
A korábbi írásban felvetett hipotézis szerint a lehetséges mechanizmusok közül, ami összekapcsolja a magas rendezettségi lokális rendszert és környezetének anyagát, az fog megvalósulni, amely a zárt rendszerben a legnagyobb sebességű entrópianövekedést idézi elő. A biokémiai folyamatokban, ahol aminosavakból felépülő fehérjékről van szó, olyan fehérjékhez kell eljutni, melyek felgyorsítják az entrópia áramlást, és megvalósul a fehérjeszintézis reprodukciója valamilyen információtároló molekula által.
A kettős DNS lánc kémiai szerkezete
Nézzük meg a DNS lánc egy szakaszát a 2. ábrán:

- Ábra. A DNS polimer lánc egy szakasza, feltüntetve a G-C és A-T hidakat összekötő hidrogénkötéseket is.
A DNS és RNS molekulában négy bázis csoport van, a különbség, hogy a DNS-ben timin (T) helyettesíti az RNS uracil (U) bázisát. Közöttük egy metil szubsztituens a különbség, ami védő szerepet játszik a telítettlen szénatomon, és így növeli az információtárolás biztonságát. A másik három bázis ugyanaz bennük: adenin (A), guanin (G) és citozin (C).
A két DNS szálat összekötő hidakban mindig egy 6 elemű piperidin és egy 9 elemű purin gyűrű kapcsolódik össze két illetve három hidrogén kötéssel. A hidrogén hidak kialakulása teszi egyértelművé, hogy csak G-C illetve A-T kapcsolat alakulhat ki. Mivel mindig egy rövidebb és egy hosszabb bázis kapcsolódik, így a hidak hosszúsága azonos, és pont megfelel a csavart szerkezet 2 nm széles átmérőjének. Két piperidin kapcsolódása túl rövid, két puriné túl hosszú hidat hozna létre.
A nukleotidok szerkezete
A DNS lánc három komponensű nukleotid monomerekből épül fel: egy öt szénatomos cukorból, a cukrokat összekötő foszforsavból és a már említett bázis molekulákból. A 3. ábra mutatja a nukleotidokban az atomok számozási szisztémáját is:

- Ábra. Az RNS molekula nukleotid atomjainak számozási szisztémája, ezen kívül szerepel a DNS timidin monofoszfátja is, ahol a cukormolekula 2. szénatomján az OH csoport helyett hidrogén van.
A DNS és RNS közötti alapvető különbség az ötösgyűrűt alkotó cukorvegyület (pentóz) 2. szénatomján az OH hiánya (dezoxiribóz), illetve jelenléte (ribóz). A természet különös eleganciája, hogy egyetlen oxigén révén képes létrehozni a DNS és RNS funkciójának eltérését. A dezoxi struktúrában a cukor vegyület további reakcióra már nem képes az OH csoport hiánya miatt, így biztonságosan őrzi az információt, míg a ribózban épp a kritikus OH csoport játszik domináns szerepet, amikor az RNS végrehajtja a fehérjeszintézist!
Vegyük szemügyre a foszforsav szerepét, amely a cukormolekulák összekötésével hozza létre a polimer láncot! Ennek során a foszfát az egyik cukormolekula 3., a másik 5. szénatomjához csatlakozik egy-egy észter kötéssel. Az már a cukormolekula kötésszögeiből adódik, hogy a kialakuló lánc egymást követő elemei 36 fokkal csavarodnak el. Ennek duplája lenne az elcsavarodás mértéke, ha a foszfát csoport a gyűrű szomszédos szénatomjaihoz kötődne. Ennek a szögnek fontos szerepe van a hasonló struktúrájú RNS-ben, amikor az aminosav kiválasztására kerül sor.
Ezután térjünk rá a bázis és a cukormolekula közötti kötés természetére! Ez a pentóz gyűrű 1. munkapontján történik az NH és a CHOH csoport között kondenzációs (H2O kilépéses) reakcióval, ami létrehoz egy erős glikozil kötést. A kötés erősségét az okozza, hogy a CN kötés létrejöttével anomer struktúra alakul ki, ahol a szén atom négy különböző atommal: C, N, H, O alkot kémiai kötést. A kötés erőssége onnan származik, hogy az elektronok eloszlása nem igazodik szimmetriafeltételekhez, és így szélesebb az optimalizálható bázis az energia minimum keresésekor. A bázis molekula jó rögzítése viszont az információtárolás alapfeltétele.
Hogyan jutott el a természet a DNS vezérelt fehérje szintézisig: a fordított protokoll hipotézise
Mielőtt eljutnánk az első élő szervezethez, ahol már a DNS-ben felhalmozott információ vezérli a fehérjeszintézist, nézzük meg, hogyan képzelhető el a DNS fokozatos felépülése. Célunk annak megértése, hogyan kerülnek szinkronba a fehérje építkezés egyes lépései a DNS láncot tovább építő valamelyik bázissal. Kiinduló hipotézisünk szerint a vezérlés jól ismert DNS→RNS →fehérje protokollja kezdetben fordított sorrendű lehetett, vagyis a sikeresen szintetizált új fehérje adott utasítást az RNS molekulának, hogy tartalmát írja be a DNS-be, meghosszabbítva a lánc hosszúságát. Vagyis a fordított irányban működő protokoll szerint: a fehérje →RNS →DNS úton halad a genetikai információ építkezése. Ezt a hipotézist az elemi folyamatok időbeli megfordíthatóságának elve támasztja alá. Ez egyfajta „feljegyzés” készítése a sikeresnek bizonyuló aminosav beépítésekről. Van azonban egy nagy különbség a két folyamat között: a sebesség! A DNS irányából történő protokoll sebessége sokkal gyorsabb, mint amit a fehérjeátalakulás indít el.
Hasonlattal élve úgy képzelhetjük el a kezdeti protokoll fordított irányát, mint amikor kifeszítjük a nyilat az elengedés előtt. A húr kifeszítése hozza létre azt az energiát, ami utána messzire repíti el a nyílvesszőt. Ez a kifeszítés a DNS molekula megalkotása, amit nem ajándékba kaptunk, hanem fokozatosan épült fel félmilliárd év alatt. Ez a munka tette lehetővé, hogy utána az evolúció nyílvesszője a legmesszebbre jusson a követkető négy milliárd év alatt.
A véletlenszerű reakciók során létrejöhet valamilyen RNS trimer, ami három bázis molekulát tartalmaz. Ezt nevezi a szakirodalom kodonnak. A kodon képes kiválasztani egyet a 20 aminosavból, majd elindítani egy reakciósort, ami által az aminosav hozzákötődhet a fehérjéhez. Előfordulhat, hogy a beépítés sikertelen marad, ekkor nem változik semmi, de jöhet utána egy következő próbálkozás egy másik kodonnal, ami előbb vagy utóbb már sikeresen építi be a kiválasztott aminosavat a fehérjébe. A hipotézis szerint az új fehérje képes lehet arra, hogy parancsot adjon az RNS trimernek a DNS lánc tovább építésére felhasználva az RNS trimer komplementer bázisait. Egy adott bázis molekulához szigorúan csak egy komplementer tartozik, amit hidrogén kötések határoznak meg a pirimidin és purin bázisok között az U-A, G-C, C-G, A-T párosítások szerint.
Az RNS trimerek (kodonok) aminosav kiválasztási szabályai
A kutatások már felderítették, hogy az egyes trimerek, vagyis a kodonok, melyik aminosavat választják ki. Alapszabály, hogy egy trimer csak egyetlen aminosavat választhat ki. Van azonban 4 olyan trimer, amely nem választ ki egyetlen fehérjét sem, de ezek sem feleslegesek, mert szükség van a kiolvasás kezdetét megadó start jelre (AUG), és a befejező stop jelre is (UAA, UAG, UGA). Az összes kodon, 4x4x4 = 64, szerepel a 4. ábrán a táblázatban:

- Ábra. Az RNS trimerek (kodonok) által kiválasztott aminosavak összefoglaló táblázata
A bázisok sorrendje nagyon fontos, különösen az első két bázisé. Kritikus tényező a trimerek geometriája és benne a hidrogén kötésre alkalmas N atomok helyzete. Úgy képzelhetjük el, hogy minden egyes trimer egy zárszerkezet, amelybe az aminosavak kulcsa illeszkedik bele. Ennek a zárszerkezetnek három „lemeze” van, és a lemezek 36, illetve 72 fokkal vannak elforgatva. Ebből már érthető, hogy miért éppen három betűsek a kodon szavai. A negyedik lemez már több mint 90 fokkal lenne elcsavarva, amit már az aminosavak nem tudnának összekötni. Az is érthető, hogy a két betűs kodonok nem adnak elég információt, mert ezek csak 16 féle kodont alkotnának, márpedig 20 különböző aminosav kódolására van szükség. Az is érthető, hogy miért négy bázist használ a genetikai információtároló molekula és nem a számítógépek bináris rendszerét. Bináris esetben már legalább öt betűs szavakra lenne szükség, és ekkor a felső lemezek elforgatása már jóval meghaladná az aminosavak által még elérhető 90 fokos szöget, vagyis az aminosavak nem érhetnék el a felső lemezeket.
Érdemes áttekinteni a 20 aminosav szerkezetét az 5. ábrán:

- Ábra. A fehérjéket felépítő 20 aminosav kémiai szerkezete
Tanulságos összehasonlítani az aminosavak méretét a „zárak” kiterjedésével. A 4. ábra táblázata szerint nyolc olyan aminosav van, ahol a felső (harmadik) lemezre már nincs is szükség, itt az első két bázis már kijelöli az aminosavat, és a felső lemez már bármelyik lehet. A legkisebb aminosav, a glicin esetén nagyon szoros zárra van szükség az illesztéshez, ezért alkotja a legnagyobb purin, vagyis GG a két alsó lemezt. A többi esetben, egy kivételével, csak az számít, hogy a felső lemez rövid (pirimidin), vagy hosszú (purin) legyen. Csak a legnagyobb méretű aminosav esetén (triptofán) fontos, hogy a felső lemez épp a legnagyobb bázis, vagyis G legyen. Ebből az összegzésből sokat megtudhatunk, hogyan is működik a genetika logikája. Itt csak egy szempontot, a méretbeli különbséget emeltük ki, de fontosak az aminosavak további tulajdonsága is, például az anion, illetve kation jelleg, a töltések (pozitív, negatív, semleges) megjelenése, a polaritás és még sorolhatnánk.
Kromoszómák: a genetikus információ szavai és mondatai
A rendkívül változatos növényi, állati életformák mellett még ott vannak a gombák is, közös bennük a milliárdnyi monomerből felépülő DNS molekula, és a jóval kisebb RNA molekulák számtalan típusa. Az egyes kodonok az információ szavai, de a tulajdonságokat már a kromoszómák mondatai fogalmazzák meg. Ezek az összehajtott DNS kettős csavar különálló tartományai. Ennek működése két fontos szerkezeti tulajdonságon alapul, az egyik, hogy az összekötő foszfát molekula a ribóz CH2 alkil csoportjának 5. szénatomjához csatlakozik, amiért egy flexibilis alkil csoporton keresztül jön létre a kémiai kötés, ami megengedi a DNS csavartengelyének behajlítását. Ez teszi lehetővé a DNS lánc tömör raktározását a kromoszómák belsejében. Maga a DNS molekula kihúzva 2 m hosszú lenne, viszont bele kell, hogy férjen a parányi sejtmagba. A másik követelmény a híddal összekötött két szál szétválaszthatósága, majd egymástól való eltávolítása. Ez alapvető folyamat a replikációban, a DNS és a kromoszómák megkettőzésében. Ezt elősegíti a hidrogénkötések gyengesége az elektronok által megvalósított vegyérték kötésekhez képest. A szorosan összehajtogatott szál könnyen összetapadhat, de erre is talált megoldást a találékony természet: a foszfát csoportokon ott van egy többlet elektron negatív töltése, ami taszítást hoz létre a DNS szál tartományai között. Hihetetlen, hogy a természet mennyire gondosan jár el az élet megalkotásakor!
Sejtosztódáskor a DNS kettős szál szétválása külön-külön megy végbe minden egyes kromoszómában, amiből az emberi sejtben 23 pár, vagyis 46 van. A folyamat részleteinek ismertetése nem célunk, mert alapvetően a DNS és RNS működésére koncentrálunk. De térjünk vissza az RNS esetén tárgyalt start és stop kodonokra. Azok a kodonok, amelyekhez nem tartoznak aminosavak, azonnal beíródnak a DNS-be, és amikor szétnyílik a kettős szál, a start kodon indítja el a másolási folyamatot, amely addig tart, amig nem jön elő valamelyik stop kodon. A DNS kettős szál szétnyílásakor kerül sor az információ átvitelre a kromoszóma RNS molekulájára, ez az a momentum, amikor könnyen becsúszik egy-egy másolási hiba, ami már nem a szokott fehérjét hozza létre, hanem egy új típust. Ide sorolható az ivaros szaporodás folyamata is, de erre nem térünk ki, mert túl messzire vezetne az eredeti célkitűzéstől. A természet még a hibát is felhasználja az adaptációs folyamatban, ha az új variáns kevésbé alkalmas az életre, akkor elpusztul, nem szaporodik tovább. De ha alkalmasabbnak bizonyul a korábbinál, az evolúció új szintje jöhet létre.
ATP, az élet energiaforrása
A DNS információjának átmásolása, és különösen az RNS szintetizáló munkája a fehérje alkotásban, energiát kíván és nem is keveset. A természet erre is rendkívül elegáns megoldást talál, amikor összekapcsolja a polimerszintézist az energia kiszabadításával. Erre a foszfátokat tudja felhasználni, amelyek egymással is kötéseket hozhatnak létre, ilyenek a trifoszfátok, amely az RNS egyik alapkövéhez, az adenin és a pentóz együtteséhez kapcsolódik:

- Ábra. Az adenozintrifoszfát (ATP) szerkezeti képlete
Ennek a molekulának különös tulajdonsága, hogy egy, vagy két forszfát leválása igen jelentős szabadenergia felszabadulással jár, ráadásul ez a szétválás egyúttal tovább léphet a foszfát csoport hozzákapcsolásával a ribóz 3. munkapontján lévő szénatomhoz, ami pedig nem más, mint az egyik nukleotid! Miért éppen az adenin bázist választotta energiaforrásként a természet, nem lehetett volna a guanidin, vagy valamelyik pirimidin? Ebben valószínűleg a reakció képesség döntött, amiben az adenin bázis felülmúlta a többieket.
Optimumkeresés: vajon csak egyetlen útja van az élet keletkezésének?
A fizika, a kémia és az élet folyamatai is optimális irányban mennek végbe. Végtelen számú lehetőség, amiből kiválasztódik egy, ami végül megvalósul. Célunk, hogy megértsük ennek útját itt a földi körülmények között Az élet kialakulása és benne az emberi tudat megjelenése teremtési folyamat, de ez nem valamilyen egyszeri művelet, hanem hosszú evolúció. Ami igazán bámulatos az a harmónia, ahogyan a törvények egymásba kapaszkodnak, ahogyan a legtávolabbi fizikai törvények harmóniája megvalósul. Ilyen találkozás a csillagokban működő magfizikai reakciók összhangja az élet létrejöttének ritmusával. A magfizika törvényei szabják meg a csillagok élettartamát: milyen hosszú ideig működhet egy csillag állandó és egyenletes energiakibocsátás mellett? Ennek élettartama 10 milliárd év körül van, ez azaz időtáv, ami szükséges, hogy megvalósuljon a tudatos élet, az univerzum önmegismerése. Ismereteink szerint ehhez a Földnek négy és fél milliárd évre volt szüksége. Ez az összhang is a teremtés igazi csodái közé tartozik.
Az emberi kíváncsiság felveti a kérdést, vajon egyedüliek vagyunk az univerzumban, vagy legalább is itt a Tejútban? Érdekes bizonyos számokat összehasonlítani, még ha ezeknek nincs is semmi közük egymáshoz. Ilyen például, hogy a DNS szál egy milliárd egységből épül fel. Tehát ekkora számú egyedi egység képes tárolni annyi információt, ami szükséges az élőszervezet felépítéséhez. A másik szám, amit ezzel összevethetünk a csillagok száma a Tejútban, ez százmilliárd körül van, a csillagok körüli bolygók száma is legalább ekkora, sőt valószínűleg nagyobb is ennél. Ebből az arányból arra következtethetünk, hogy meg van az esély, hogy galaxisunkban másutt is fellelhessük az élet, sőt a tudatos élet nyomait.
Van-e esély idegen civilizációk találkozására? Gyakorlatilag nincs, mert ha mondjuk, tízezer fényévre van tőlünk egy másik civilizáció, akkor figyelembe véve a reális utazási sebességet legalább tízmillió év kellene, hogy eljussanak ide. Már pedig ez hosszabb idő annál, amire az emberiség egész léte visszatekint. Nagy szerencse! Mert az eltérő szintű civilizációk összeütközése valószínleg nem sok jóra vezetne. Amire viszont kínálkozik esély, hogy eljusson hozzánk egy kődarab, egy aszteroida, amiben fellelhetnénk az élet távoli lenyomatát. Akkor már megvizsgálhatnánk, vajon a távoli élet is azt a DND-RNS nyomvonalat követi, ami a Földön megvalósult?
Az élő sejt működéről szóló összeállításunk nagyon vázlatos, nem esett szó sok lényeges dologról, a mitokondriumról, az enzimek működéséről, az RNS molekulák különböző változatairól és még hosszan sorolhatnánk. Nem is ez volta cél, csak annak bemutatása, hogyan kapcsolódik össze a DNS és RNS molekulák működése kémiai és geometriai szerkezetükkel. Zárásként gondoljuk végig, vajon a természet az egyetlen jó megoldást találta meg, vagy lehetségesek-e más molekuláris megoldások is? Induljunk ki a hélix váz alapjából, a ribózból és annak dezoxi változatából. Vajon miért egy cukorvegyület az alap? A legfontosabb a munkapontok száma, a hélix képzéshez eleve két munkapontra van szükség és harmadiknak ott van az információtároló bázis. A fehérjeszintézishez kell egy negyedik munkapont is. Ezt lehet megoldani, ha a szénvázhoz több OH csoport kötődik, ami a cukorvegyületek ismertető jegye. Az információ kiolvashatósága megköveteli a merev szerkezetet, mert a túlzott mozgékonyság elmosódottá teheti a genetikai szöveget. Szóba jöhetnének a hatos gyűrűvel rendelkező cukrok is, de nincs szükség több munkapontra, azok reakciói csak zavarnák az egyértelmű információ tárolást, amellett a hatos gyűrűk flexibilisek is. Így nem lehet kétségünk, hogy a ribóz megtalálása a legjobb megoldás. Az információtárolás biztonságát segíti, hogy a felesleges negyedik OH a DNS-ben leváltásra kerül egy oxigéntől való megszabadulással.
A következő komponens, ahol felvetjük az egyediség kérdését, a polimer lánc megalkotója, a foszfát szerepe. Ez is a természet igazi telitalálata! A foszfát csoport nemcsak a polimer lánc megalkotója, hanem biztosítja a különböző átalakulási reakciók energiát is, azáltal, hogy trifoszfáttá összekapcsolódva kötődik az adenin alapú nukleotid bázishoz. Szintén fontos a lánc negatív töltése, megakadályozva a hosszú összehajtogatott DNS lánc összetapadását. Mivel a polimerlánc létrehozójának a két észter kötésen kívül a negatív töltésű elektrontöbblet is biztosítani kell, olyan savra van szükség, amit az ötvegyértékű foszfor tud létrehozni. Foszforral analóg atomok is szóba jöhetnének, de ezek a savak kevésbé képesek akkora energiát biztosítani, mint a trifoszfátok. Emiatt nem lehet kétséges, hogy a foszfát az ideális polimerláncot alkotó ágens.
Végül nézzük az információhordozó bázisra kirótt követelményeket. Alapkövetelmény, hogy legyen benne olyan NH csoport, amely erős kötést alkot a ribóz kitüntetett pozíciójú OH csoportjával, ahol a hidrolízis során anomer szénatom alakul ki, erős kémiai kötést alkotva a cukormolekula és a bázis között. További nitrogén atomokra van szükség a híd alkotó hidrogénkötésekhez is. További követelmény a két DNS szálat összekötő híd hossza is, melynek meg kell egyezni a hélix átmérőjével. Az információmegőrzés biztonságát segíti elő, hogy merev a bázis hidak szerkezete, ami szénből és nitrogénből felépülő heterociklikus vegyületeket kíván meg. Elképzelhető, hogy más heterociklikus vegyületek is megfelelnének információtároló bázisnak? Talán igen, de valószínűleg a kiválasztott bázisok voltak a legkönnyebben szintetizálhatók a spontán kémiai reakciók során. Bizonyítani nehéz, de nagyon valószínű, hogy a természet műhelye a legjobb megoldást találta meg az élet információs alapját alkotó DNS molekulák létrehozásával. Ezt támasztja alá, hogy négy és fél milliárd év alatt kialakult rendkívül változatos élővilág kizárólag a DNS-RNS molekulapáros alapján szerveződik. A sok lehetőség közül az optimum valósult meg, az egyetlen megoldás, ami végül az élet alapja lett.
Az a kérdés is felvethető, hogy miért arra a 20 aminosavra esett a választás, amiből felépült az élő szervezeteket alkotó fehérjék óriási választéka. Ez alighanem a kodonok struktúrájából következik, mert csak olyan aminosavakat raktároz el a sejt riboszómája, amelyből az RNS már építkezni tud.
Evolúció és élet
A korábbi bejegyzésben tettük fel a kérdést, hogy megfejtheti-e a tudomány az élet keletkezésének titkát? A választ a termodinamika entrópia törvénye alapján kerestük. Tettünk egy kiegészítést a második főtörvényhez: az entrópia nem csak növekszik zárt rendszerben, hanem ez a növekedés ráadásul optimálisan valósul meg. A maguk területén a fizikai világ konkrét törvényei az optimum elven működnek, akkor ez miért ne vonatkozna az entrópiára is? Viszont az optimális mértékű entrópianövekedés szükségessé teszi, hogy lokálisan egyre magasabb szervezettségű anyagi objektumok jöjjenek létre. Ezáltal az evolúciót a termodinamikába beemeltük, az evolúció a termodinamika része lett. Ez a törvény viszont kerettörvény, amely konkrét fizikai, kémiai, biológiai törvények keretében érvényesül. A jelen írásban az élet kialakulásán és a genetika által feltárt folyamatokon keresztül vettük szemügyre az evolúciós törvény érvényesülését. Az élet az anyagi szerveződés legmagasabb foka, csodálatos összhang megnyilvánulása a konkrét törvények egész során keresztül. A teremtés igazi csodája, ahogy megalkotja a törvények harmóniáját, eljutva az élet megfogantatásához is.


 (5)
 (6)
 (8)
 (9)
 (10)
 (11)
 (12)
 (13)


 (15)
 (16)
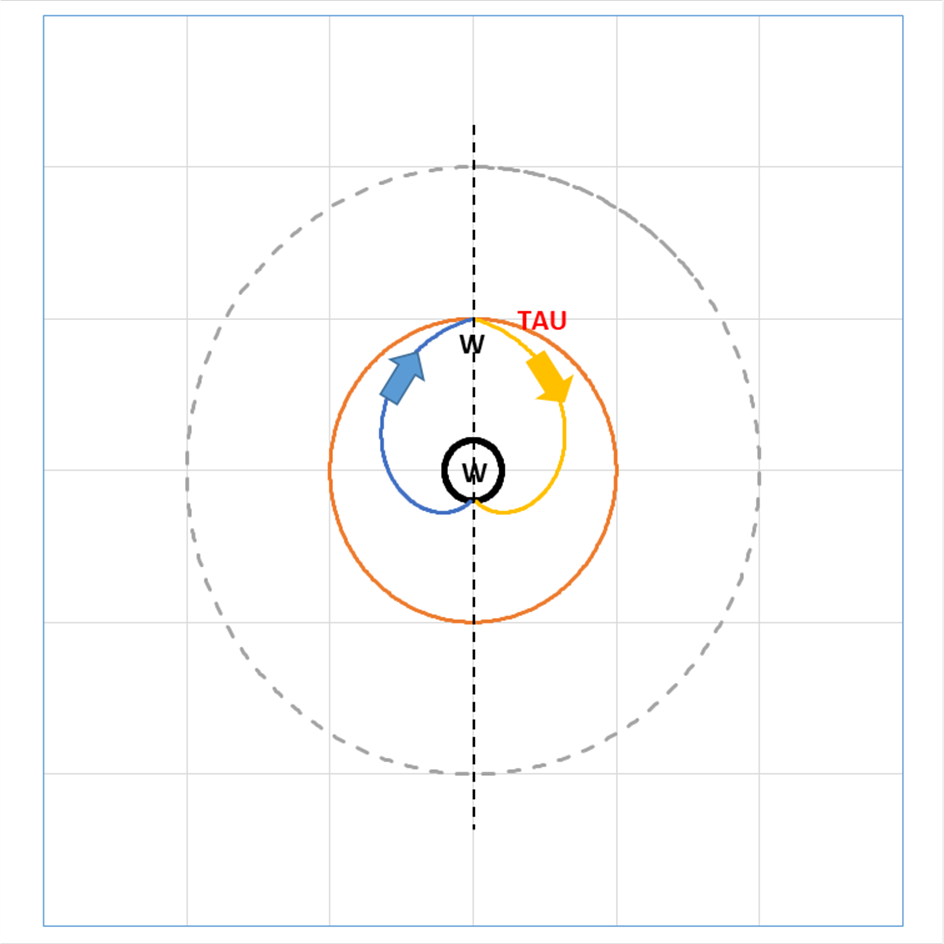
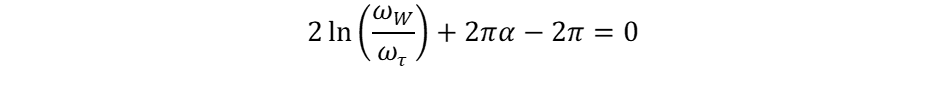 A koherencia szabályból következik a W bozon és a tau részecske energiaaránya:
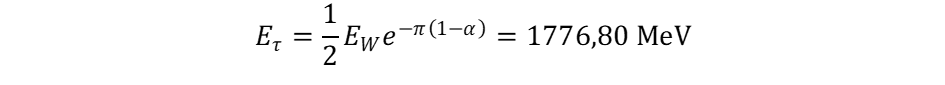 Ennek származtatásához két posztulátumot teszünk:
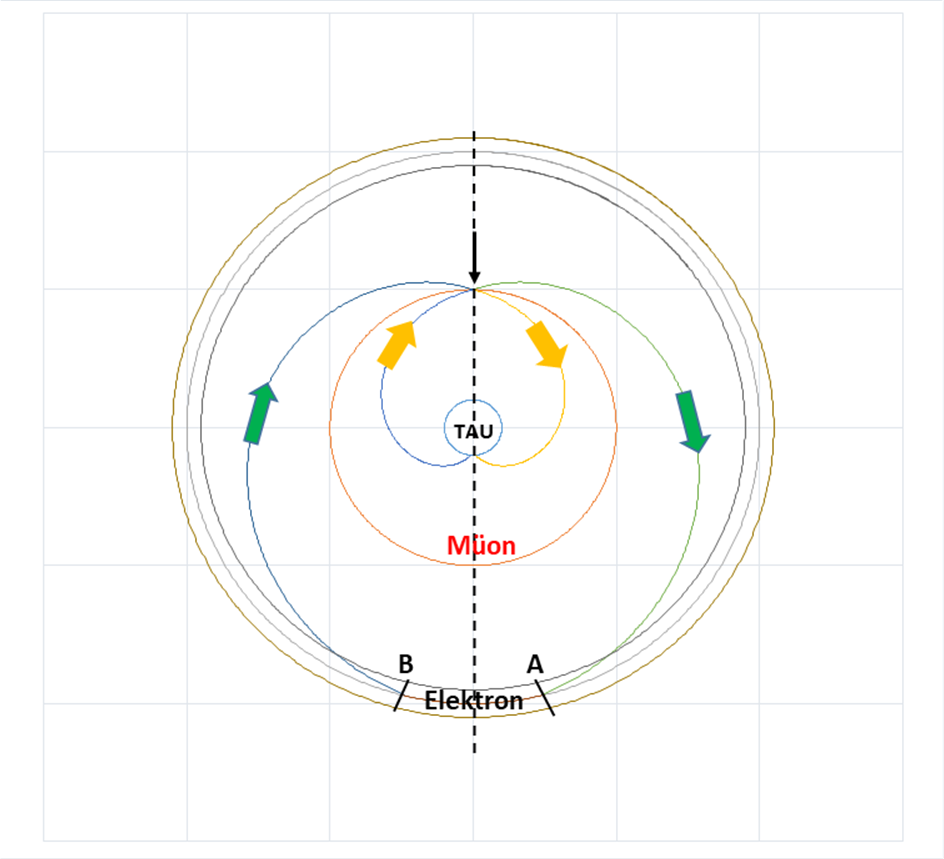
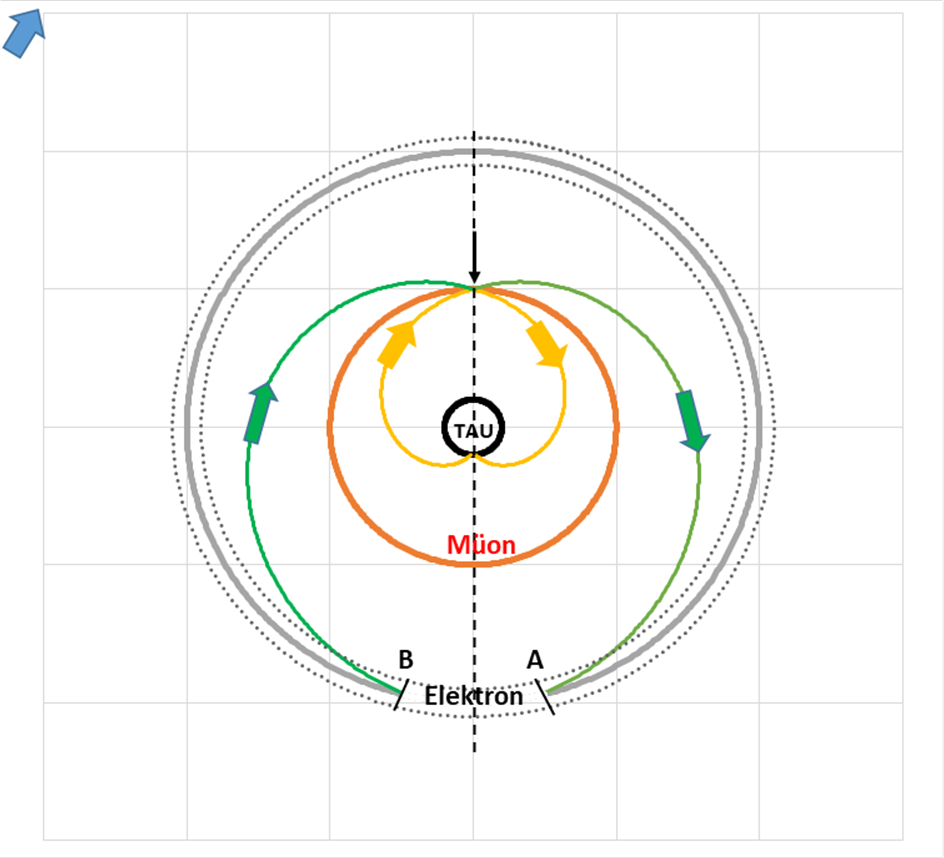
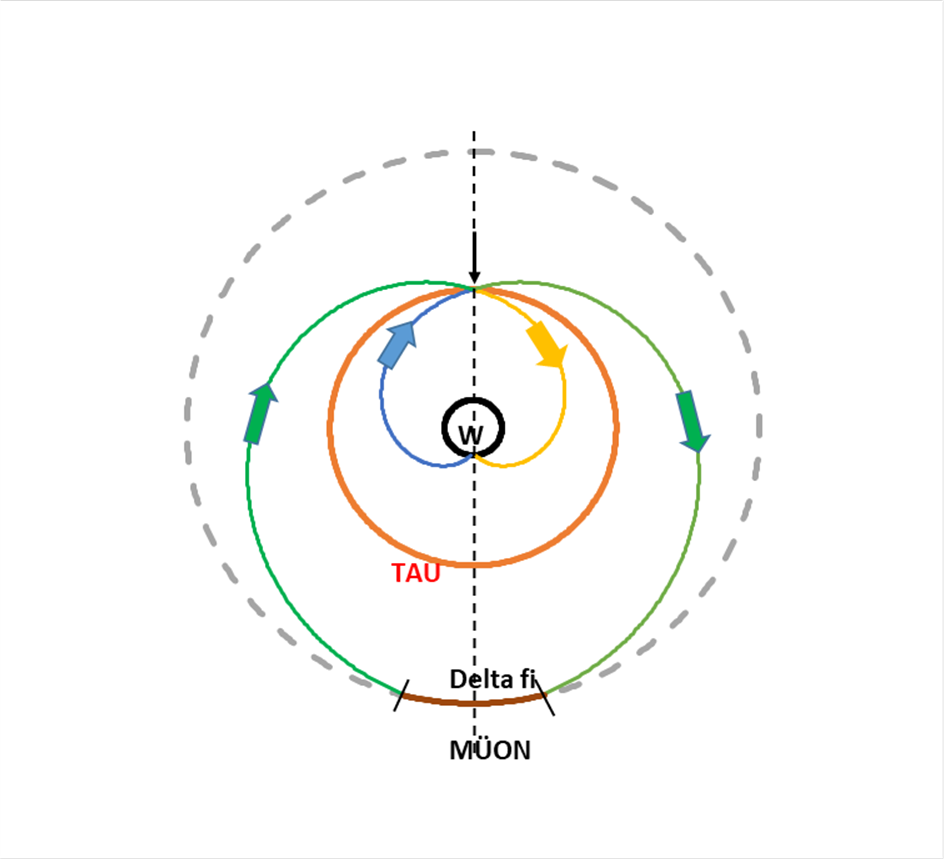 2. Ábra. A W bozon pályája a belső és a tau-müon ciklusban. A W bozont mutatja a belső fekete kör, a tau pálya a piros, a külső szaggatott kör a müon. A W spirális a tau kör feletti vékony nyíltól indul, a belső W-tau ciklust jelzi a sárga nyíl és a kék nyíl. A tau-müon ciklus W spirálja a pirossal jelölt tau körön kívül halad, zöld nyilak jelzik a két szakaszt, lent látható az egyenletes frekvenciájú delta fi szakasz.
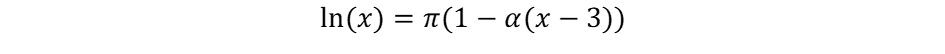
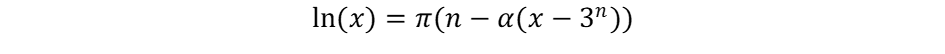 Az n = 3 esetben a számított arány x = 205,8 lesz, az elektron energia pedig Ee = 0,5134 MeV értéket kap. Ez szintén közel van a mért 0,511 MeV energiához, bár kismértékben meghaladja azt.
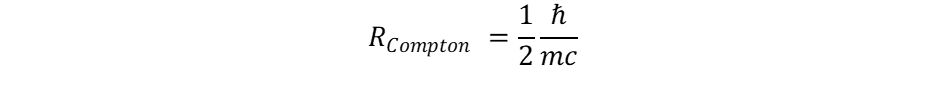 (4)
 (5)
 (6)
 (7)
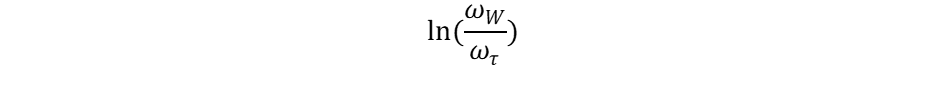
 (8)
 (9)
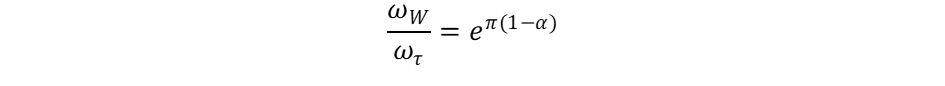 (10)
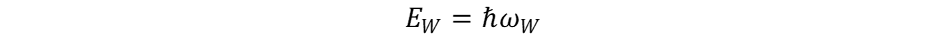 (11)
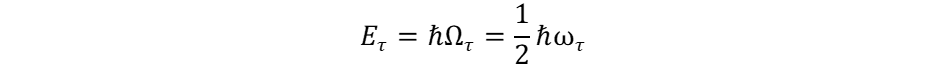 (12)
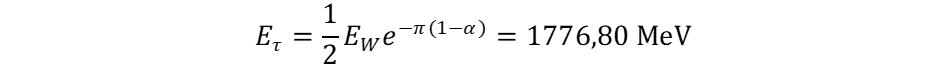 (13)
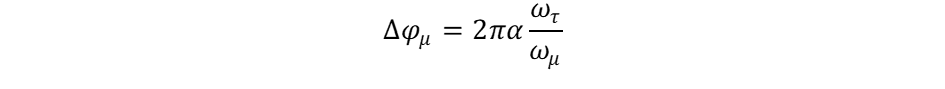 (15)
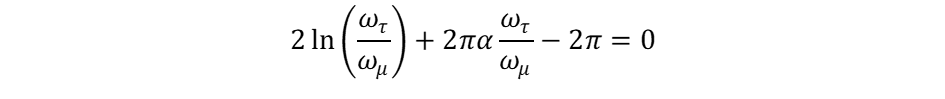 (16)
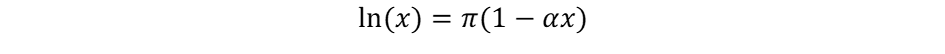 (17)
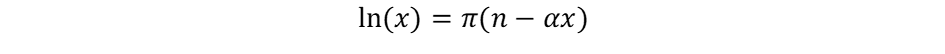 (18)

 (19)
 (20)
 (21)
 (24)
 (25)